Wpływ niskobiałkowego spożycia ciążowego na ekspresję embrionalnych mikroRNA w nerkach i w komórkach progenitorowych nefronu męskiego płodu
Mar 08, 2022
Wstęp
Brak składników odżywczych może skutkować zmianami sygnalizacyjnymi w kluczowych szlakach na różnych etapach rozwoju płodu, co może powodować nieodwracalne zaburzenia narządów i układów w wieku dorosłym [1]. Programowanie płodu odnosi się do każdego urazu podczas rozwoju, który powoduje długotrwały wpływ na strukturę lub funkcję organizmu [2]. Zakłócenia w programowaniu płodu skutkują niską masą urodzeniową, mniejszą liczbą nefronów i zwiększonym ryzykiem chorób sercowo-naczyniowych inerkowyzaburzenia w wieku dorosłym [3–6]. Badania innych autorów i nas wykazały niższą masę urodzeniową, o 28 procent mniej nefronów, zmniejszonąnerkowywydzielanie soli, przewlekłeniewydolność nereki nadciśnienie tętnicze w podaży ciążowej niskobiałkowej (LP) w porównaniu ze standardowym (NP) spożyciem białka przez potomstwo w wieku dorosłym [3–7]. Nefrogeneza obejmuje ścisłą kontrolę ekspresji genów, syntezy białek i przebudowy tkanek. Badania wykazały, że liczba nefronów zależy od interakcji między pączkiem moczowodu (UB) a komórkami progenitorowymi mezenchymu metanephros (MM) [8–10]. Sygnały z MM indukują stymulowany przez UB wzrost i rozgałęzienie układu kanalików. Z kolei w proliferacji i różnicowaniu MM, tworzącym czapeczkę mezenchymalną (CM), pośredniczą końce UB [11].

CISTANCHE POPRAWI CHOROBY NEREK/NEREK
Istnieje duże zainteresowanie rolą zmian epigenetycznych dotyczących długofalowego wpływu stresu prenatalnego na rozwój płodu [12]. MikroRNA (miRNA) to kodowane w genomie małe, niekodujące RNA o długości około 22 nukleotydów, które odgrywają zasadniczą rolę w potranskrypcyjnej regulacji ekspresji genów docelowych [13–16]. miRNA kontrolują ekspresję genów po transkrypcji poprzez regulację translacji lub stabilności mRNA w cytoplazmie [17, 18]. Badania funkcjonalne wskazują, że miRNA biorą udział w krytycznych procesach biologicznych podczas rozwoju i fizjologii komórki [13, 16]. Zmiany w ich ekspresji zaobserwowano w kilku patologiach [16, 19]. Tak więc charakterystyka miRNA pomogła zrozumieć regulację genów i proliferację komórkową, różnicowanie i apoptozę oraz wyjaśnić zaburzenia patofizjologii, w tymnerkazaburzenia [20–22]. Badania wykazały, że podczasnerkamiRNA ontogenezy są niezbędne do rozwoju nefronu [23–26]. Co więcej, niedostateczna ekspresja niektórych miR NA w komórkach progenitorowych MM zmniejsza proliferację komórek, co skutkuje wczesnym różnicowaniem, a w konsekwencji zmniejszeniem liczby nefronów [27, 28]. Zjawisko to charakteryzuje się zwiększoną apoptozą i wysoką ekspresją Bim w komórkach progenitorowych [27]. W ten sposób miRNA modulują równowagę między apoptozą a proliferacją tych pierwotnych komórek metanefrycznych [29].
Postawiliśmy hipotezę, że nieznane zmiany epigenetyczne i profilowanie ekspresji miRNA są związane znerkazaburzenia rozwojowe u potomstwa o ograniczonej zawartości białek matki. W związku z tym naszym celem była ocena wzorców miRNA i przewidywanej ekspresji genów u płodunerkaw 17. dniu ciąży (17-DG) potomstwo płci męskiej o ograniczonej zawartości białka w celu zidentyfikowania szlaków molekularnych i zaburzeń związanych znerkowyproliferacja i różnicowanie komórek podczasnerkarozwój.
Słowa kluczowe:niewydolność nerek; kanaliki nerkowe; zaburzenia nerek; rozwój nerek; nerka
Materiał i metodologia
Zwierzęta i dietyEksperymenty przeprowadzono w sposób szczegółowo opisany wcześniej [5, 6] na dobranych wiekowo samicach i samcach szczurów rasy Wistar HanUnib pokrewnych przez rodzeństwo (250–300 g) pochodzących z materiału hodowlanego dostarczonego przez CEMIB/UNICAMP , Campinas, SP, Brazylia. Środowisko i warunki mieszkaniowe stwarzały odpowiednie warunki do zarządzania ich zdrowiem i dobrym samopoczuciem podczas procedury eksperymentalnej. Natychmiast po odsadzeniu w wieku trzech tygodni zwierzęta utrzymywano w kontrolowanej temperaturze (25˚C) i oświetleniu (07:00-19:00h) ze swobodnym dostępem do wody z kranu i standardowej laboratoryjnej karmy dla gryzoni (Purina Nuvital , Curitiba, PR, Brazylia: zawartość Na plus: 135 ± 3 μEq/g; zawartość K plus: 293 ± 5 μEq/g), przez 12 tygodni przed rozmnażaniem. Instytucjonalny Komitet ds. Etyki ds. Wykorzystywania Zwierząt na Uniwersytecie Stanowym w São Paulo (#446-CEUA/UNESP) zatwierdził protokół eksperymentalny, a ogólne wytyczne ustanowione przez brazylijskie kolegium eksperymentów na zwierzętach były przestrzegane podczas całego dochodzenia. Jako dzień, w którym wymaz z pochwy wykazał nasienie, wyznaczono 1 dzień ciąży. Następnie matki były utrzymywane ad libitum przez całą ciążę na izokalorycznej laboratoryjnej karmie dla gryzoni o standardowej zawartości białka [NP, n=36] (17% białka) lub niskiej zawartości białka [LP, n=51 ] (6 procent białka). Spożycie pokarmu NP i LP przez matkę określano codziennie (następnie normalizowano względem masy ciała), a masę ciała matek rejestrowano co tydzień w obu grupach. W 17 dniu ciąży (17-DG), samice znieczulono ketaminą (75 mg/kg) i ksylazyną (10 mg/kg) i odsłonięto macicę. Płody usunięto i natychmiast uśmiercono przez dekapitację. Płody zważono i pobrano ogon i kończyny do określenia płci. Metanefry pobrano do sekwencjonowania nowej generacji (NGS), RT-qPCR i analiz immunohistochemicznych.
CISTANCHE POPRAWI NIEWYDOLNOŚĆ NEREK/NEREK
Określanie płciNiniejsze badanie przeprowadzono tylko na potomstwie płci męskiej 17-DG, a płeć określono za pomocą analizy sekwencji Sry konwencjonalnej reakcji PCR (reakcja łańcuchowa polimerazy). DNA ekstrahowano przez lizę enzymatyczną proteinazą K i Phenol-Chloroform. Do reakcji użyto Master Mix Colorless — Promega, w warunkach cyklicznych producenta. Firma Integrated DNA Technologies (IDT) zsyntetyzowała starter o następujących sekwencjach: Forward: 5'-TACAGCCTGAGGACATATTA-3'Reverse: 5'-GCACTTTAACCCTTCGATTAG-3'.
Ekstrakcja całkowitego RNARNA wyekstrahowano z NP (n=4) i LP (n=4) w całościnerkiprzy użyciu odczynnika Trizol (Invitrogen), zgodnie z instrukcją podaną przez producenta. Całkowita ilość RNA została określona na podstawie absorbancji przy 260 nm przy użyciu spektrofotometru nanoVue (GE Healthcare, USA). Integralność RNA zapewniono poprzez uzyskanie RNA Integrity Number — RIN > 8 za pomocą Agilent 2100 Bioanalyzer (Agilent Technologies, Niemcy) [30].
miRNA-Seq i analiza danychSekwencjonowanie przeprowadzono na platformie MiSeq (Illumina). Protokół był zgodny z instrukcjami producenta dostępnymi wPokrótce, sekwencjonowanie obejmuje konstrukcję biblioteki i użyto 1 ug całkowitego RNA. Na tym etapie podłącza się adaptery 3' i 5'. Po ligacji adapterów przeprowadzono reakcję odwrotnej transkrypcji w celu wytworzenia cDNA. Następnie został amplifikowany w standardowej reakcji PCR, która wykorzystuje startery zawierające indeks sekwencji do identyfikacji próbki – tę bibliotekę cDNA, poddaną elektroforezie w żelu agarozowym w celu izolacji miRNA. Po oznaczeniu ilościowym stężenie biblioteki znormalizowano do 2 nM przy użyciu 10 nM Tris-HCl, pH 8,5, a sekwencjonowanie transkryptomu przeprowadzono za pomocą zestawu MiSeq Reagent Kit v2 (50 cykli).
Analiza danych została przeprowadzona we współpracy z dr Tao Chen. z Wydziału Genetyki i Toksykologii Molekularnej, Narodowe Centrum Badań Toksykologicznych, Jefferson, AR, USA. Dane z sekwencjonowania następnej generacji (NGS) miRNA zostały wygenerowane w formacie FASTA i zaimportowane do BaseSpace.com (Illumina, USA). Jakość danych oceniano przy użyciu oprogramowania CASAVA, opracowanego przez producenta (Illumina). Analizy przeprowadzono za pomocą BaseSpace miRNA Analysis (z University of Torino, Kanada) i mapowanie sekwencji różnych miRNA za pomocą Small RNA (Illumina, USA) dla genomu szczura. Badanie miRNA o zróżnicowanej ekspresji analizowano przy użyciu oprogramowania Ingenuity Pathway Analysis (Ingenuity, USA).
walidacja ekspresji miRNAW każdej grupie dla miRNA użyto czterech potomków płci męskiej z różnych miotów (miR{{0}}p, -144-3p, -298-5p, niech-7a{{ 4}}p, -181a-5p, -181c-3p i -199a-5p). W skrócie, 450 ng RNA poddano odwrotnej transkrypcji, bez wstępnej amplifikacji, przy użyciu zestawu TaqMan1 Micro RNA Reverse Transcription Kit, zgodnie z wytycznymi producenta. Komplementarny DNA (cDNA) amplifikowano przy użyciu testów TaqMan MicroRNA (Life Technologies, USA) z TaqMan1 Universal PCR Master Mix, bez AmpErase1 UNG (2x) na StepOnePlusTM Real-Time PCR System (Applied BiosystemsTM), zgodnie z instrukcjami producenta. Analizę danych przeprowadzono przy użyciu względnej ekspresji genów ocenianej przy użyciu porównawczej metody kwantyfikacji (Pfaffl, 2001). W oparciu o analizę stabilności, jako gen odniesienia zastosowano snRNA U6 i scaRNA U87. Wszystkie względne oznaczenia ilościowe zostały ocenione przy użyciu oprogramowania DataAssist, v 3.0, przy użyciu metody ΔΔCT. Dane miRNA zostały wygenerowane zgodnie z wytycznymi MIQE [31].

CISTANCHE POPRAWI FUNKCJĘ NEREK/NEREK
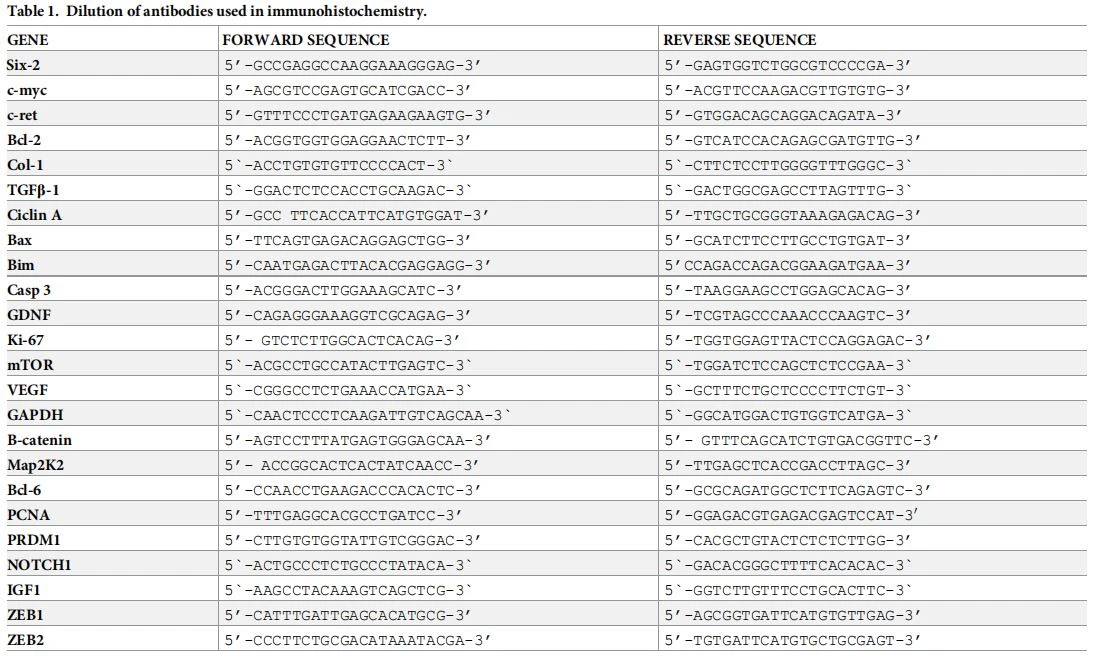
RT-qPCR przewidywanych genów docelowychDo syntezy cDNA zastosowano zestaw do odwrotnej transkrypcji cDNA o dużej pojemności (Life Technologies, USA). Reakcje RT-qPCR dla Bax, Bim, Kaspazy-3, Kolagenu 1, GDNF, PCNA, TGF -1, Bcl-2, Bcl-6, c-Myc, c -ret, cyklina A, Map2k2, PRDM1, Six-2, Ki-67, MTOR, -catenin, ZEB1, ZEB2, NOTCH1 i IGF1 zostały wykonane przez SYBR Green Master Mix (Life Technologies, USA ) dostarczone przez IDT1 Integrated DNA Technologies (tabela 1). Reakcje przeprowadzono w całkowitej objętości 20 µl stosując 2 µl cDNA (rozcieńczony 1:30), 10 µl SYBER Green Master Mix (Life Technologies, USA) i 4 µl każdego specyficznego startera (5 nM). Amplifikację i detekcję przeprowadzono przy użyciu systemu StepOnePlusTM Real-Time PCR System (Applied BiosystemsTM). Wartości Ct zostały przekształcone na wartości ekspresji względnej przy użyciu metody ΔΔCt z danymi potomstwa metanephros znormalizowanymi za pomocą GAPDH jako genu referencyjnego [32].
immunohistochemia,Płód (n {{0}} na grupę) usunięto i natychmiast utrwalono w 4% paraformaldehydzie (0,1 M fosforan, pH 7,4). Materiały odwodniono, diafanizowano i umieszczono w paraplastach, a bloki pocięto na sekcje o grubości 5-μm. Skrawki histologiczne odparafinowano i poddano obróbce pod kątem immunofluorescencji i immunoperoksydazy. Sekcje były
inkubowane z roztworem blokującym (8 procent płodowej surowicy bydlęcej, 2,5 procent albuminy bydlęcej i 2% odtłuszczonego mleka w proszku w PBS). Następnie utrwal się z podstawowym przeciwciałem (anti-Six-2) rozcieńczonym w PBS zawierającym 1 procent odtłuszczonego mleka przez noc w lodówce. Po przemyciu PBS skrawki inkubowano ze specyficznym drugorzędowym przeciwciałem, skoniugowanym z fluoroforem Alexa 488, rozcieńczonym w tym samym buforze zawierającym 1% mleka przez 2 godziny w temperaturze pokojowej. Po kolejnych płukaniach PBS szkiełka założono szkiełkami nakrywkowymi stosując fluorescencyjną pożywkę montażową Vectashield (Vector Laboratories, Inc. Burlingame). Fluorescencję w próbce wykryto za pomocą laserowej mikroskopii konfokalnej. Obrazy uzyskano przy użyciu systemu Focus Imagecorder Plus. Dla białek c-Myc, Ki-67, Bcl-2, TGF -1, - kateniny, ZEB1, ZEB2, kaspazy 3, cykliny A i WT1, przeprowadzono immunohistochemię. Szkiełka nawadniano i po płukaniu w PBS pH 7,2 przez 5 minut, odzyskiwanie antygenu przeprowadzono w buforze cytrynianowym pH 6,0 przez 25 minut w szybkowarze. Szkiełka płukano w PBS. Następnie przeprowadzono blokadę endogennej peroksydazy nadtlenkiem wodoru i metanolem przez 10 minut w ciemności. Skrawki ponownie przepłukano w PBS. Następnie śledzono blokowanie niespecyficznego wiązania i szkiełka inkubowano z roztworem blokującym (5% odtłuszczonego mleka w proszku w PBS) przez 1 godzinę. Skrawki inkubowano z pierwszorzędowym przeciwciałem (Tabela 2), rozcieńczonym w 1% BSA przez noc w lodówce. Po przemyciu PBS skrawki eksponowano na specyficzne przeciwciało drugorzędowe przez 2 godziny w temperaturze pokojowej. Szkiełka przemyto PBS. Skrawki ujawniono za pomocą DAB (tetrachlorowodorek 3,3'-diaminobenzydyny, Sigma-Aldrich CO1, USA). Po kolejnym przemyciu pod bieżącą wodą, szkiełka wybarwiono kontrastowo hematoksyliną, odwodniono i zamknięto szkiełkiem nakrywkowym, stosując Entellan1. Obrazy uzyskano przy użyciu fotomikroskopu (Olympus BX51) lub konfokalnego Zeiss LSM 780-NLO na mikroskopie Axio Observer Z.1 (Carl Zeiss AG, Niemcy) z Narodowego Instytutu Nauki i Technologii Fotoniki Stosowanej do Komórek Biologia (INFABIC) na State University of Campinas.

Kwantyfikacja morfologicznaParafina 5 μmnerkaprzekroje analizowano przy użyciu oprogramowania CellSens Dimension z fotomikroskopu (Olympus BX51). Thenerkauzyskano dostęp do wycinków w celu określenia obszaru nerczycowego, białka CM i UB oraz liczby komórek, wybarwionych hematoksyliną-eozyną u płodu 17-DG LP (n=5) w porównaniu z potomstwem NP w tym samym wieku (n {{4 }}) od różnych matek. Określiliśmy ilościowo wszystkie CM i UB każdego analizowanego metanephros (4NP i 4LP od różnych matek), a analizę statystyczną przeprowadzono testem t, a wartości wyrażono jako średnią ± SD. Wartość p�0.05 została uznana za istotną. Do analizy statystycznej i konstrukcji figur użyto GraphPad Prism v01 Software, Inc., USA.
Analiza statystycznaZastosowano test t, a wartości wyrażono jako średnia ± odchylenie standardowe (SD). Wartość P�0.05 została uznana za istotną. Do analizy statystycznej i konstrukcji figur wykorzystano oprogramowanie GraphPad Prisma v. 01 (GraphPad Software, Inc., USA).
Wyniki
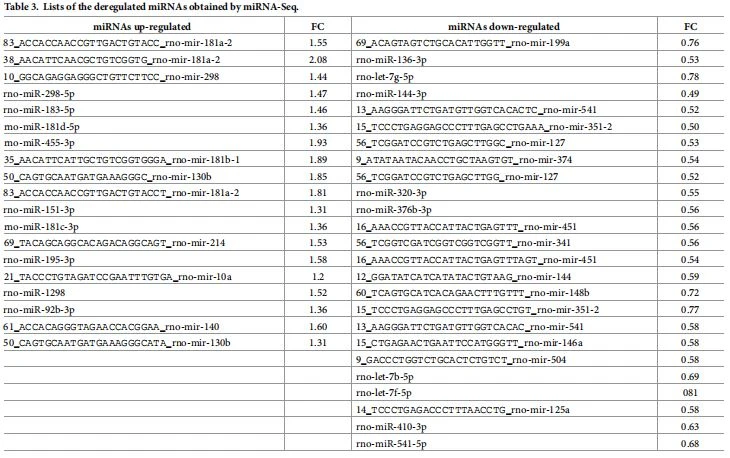
Ekspresja miRNA przez miRNA-SeqAby zrozumieć zmiany mikroRNA związane z niską zawartością białka u matkinerkowyprogramowania, wykonaliśmy ekspresję globalnej analizy profilowania miRNA. Zidentyfikowano 44 rozregulowane miRNA (p � 0.05), z których odpowiednio 19 i 25 miRNA było regulowanych w górę lub w dół (Tabela 3). MiRNA o najwyższej ekspresji oraz ich funkcje, szlaki i sieci zostały zidentyfikowane za pomocą oprogramowania Ingenuity (Tabela 4).
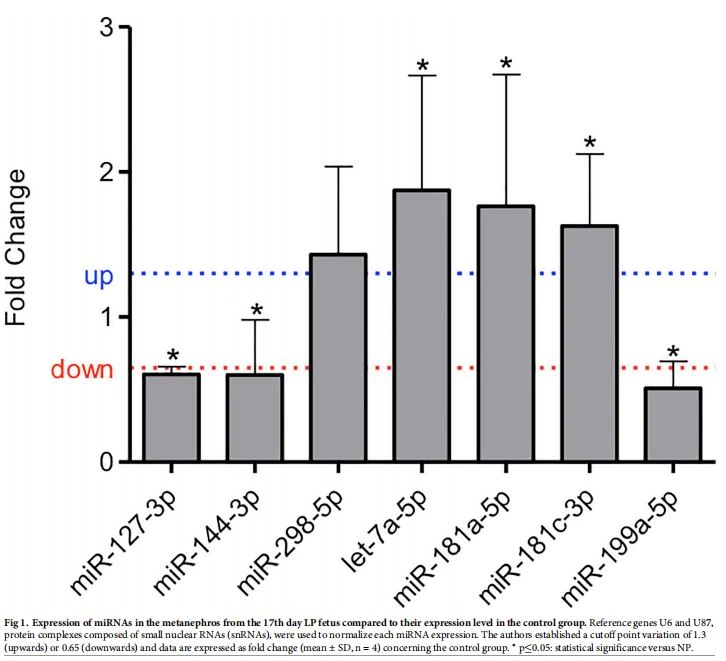
Walidacja ekspresji miRNAU zwierząt z grupy LP, Let-7a-5p, miR-181a-5p, miR-181c-3p były podwyższone, podczas gdy miR-127-3p, miR-144-3p i miR-199a-5p były regulowane w dół w stosunku do zwierząt NP. Wyniki nie wykazują żadnej różnicy w ekspresji miR-298, porównując obie grupy (ryc. 1). Tabela 5 ujawniła wartości uzyskane przez sekwencjonowanie miRNA z danymi walidacyjnymi RT-qPCR. Chociaż zaobserwowano znaczącą różnicę w ekspresji miRNA w LP w stosunku do potomstwa NP, krotność zmiany (FC) zwalidowanych miRNA była podobna do obu technik.

cele genu miRNA
Geny ekspresji przewidywanych celów różnych miRNA, takich jak Six-2, Bcl-2, PRDM1, cyklina A, PCNA, GDNF, kolagen 1, kaspaza 3 i Bim w LP nie różniły się znacząco od NP płód. Jednak ekspresja genów Bax, TGF -1 Bcl-6, c-ret, Map2k2, Ki-67, mTOR, -katenina, ZEB1, ZEB2 i IGF1 była podwyższona w {{15 }}Grupa DG LP w porównaniu z grupą kontrolną w tym samym wieku. Odwrotnie, c-Myc i NOTHC1 były regulowane w dół u potomstwa o ograniczonym dostępie do białek matki (ryc. 2).

Masa ciała płodu i morfometria metanephrosMasa ciała 17-DG LP nie różniła się od dopasowanego wiekowo potomstwa NP. Jednak mezenchym metanerka LP wykazywał 7,6% zmniejszenie powierzchni i 29% zmniejszenie grubości kory niż grupa NP (ryc. 3).ImmunohistochemiaW niniejszym badaniu płód LP wykazał znaczne zmniejszenie (około 69 procent) fluorescencji kapelusza Six-2 niż potomstwo NP (Ryc. 4).


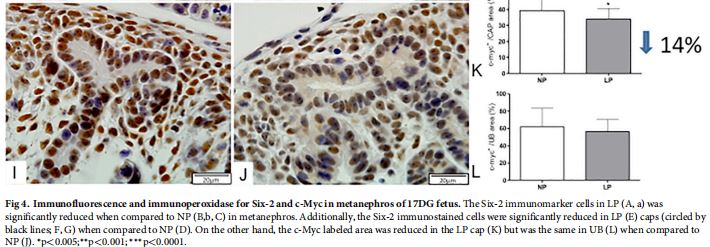
Analiza immunoperoksydazy Six-2 wykazała zmniejszoną liczbę komórek (14%) w LP CM w porównaniu z 28% zmniejszoną liczbą komórek Six-2plus w stosunku do obszaru czapeczki w porównaniu z potomstwem NP (Fig 4). Niniejsze badanie wykazało również znaczące procentowe zmniejszenie liczby komórek wybarwionych immunologicznie c-Myc CM i UB (mniej 14%) w LP w stosunku do potomstwa NP (Fig 4). Dodatkowo, odsetek obszaru znakowanego Ki-67 w CM był o 48% mniejszy w LP w porównaniu z płodem NP, podczas gdy immunoreaktywność Bcl-2 i rozszczepionej kaspazy-3 nie różniła się od obu grup (ryc. 5 i 6). Niniejsze badanie wykazało również znaczące procentowe zmniejszenie liczby komórek wybarwionych immunologicznie c-Myc CM i UB (mniej 14%) w LP w stosunku do potomstwa NP (Fig 4). Dodatkowo, procent obszaru znakowanego Ki-67 w CM był o 48 procent mniejszy w LP w porównaniu z płodem NP, podczas gdy immunoreaktywność Bcl-2 i rozszczepionej kaspazy-3 nie różniła się od obu grup (ryc. 5 i 6). Z drugiej strony, w LP, obszary znakowane kateniną CM i UB były odpowiednio o 154 i 85 procent podwyższone w porównaniu z obszarem dostępnym u potomstwa NP (ryc. 7). W tym samym czasie rozkład immunoreaktywności mTOR zajmował również znacznie większy obszar w LP CM (139 procent) i UB (104%) niż u płodu NP (ryc. 7). U potomstwa LP TGF -1 w barwieniu komórek UBS wzrósł (około 30 procent), podczas gdy w CM komórki barwione immunologicznie nie różniły się od grupy NP (Fig 8). Barwiony metanefros ZEB1, zlokalizowany w komórkach jądra CM, zwiększył się o 30% w LP w porównaniu z płodem NP (ryc. 8). Jednocześnie immunofluorescencja ZEB2, choć obecna w całych strukturach metanefro, była podobna w obu grupach eksperymentalnych (ryc. 8). Obecne badanie uwzględniające ekspresję miRNA i mRNA oraz białka


Dyskusja
Wzrosła wiedza na temat komórkowych i molekularnych mechanizmów nefrogenezy [33–37]. Jednak wiele czynników regulacyjnych i ścieżek sygnałowych zaangażowanych w:nerkowyontogeneza pozostaje niejasna [38]. miRNA odgrywają kluczową rolę w regulacji ekspresji genów podczasnerkowyrozwój [25, 39–41]. O ile nam wiadomo, nie przeprowadzono analiz ekspresji miRNA i mRNA w komórkach mezenchymalnych męskich komórek mezenchymalnych DG pobierających przez matkę LP 17-DG. Proponujemy nowy mechanizm molekularny zaangażowany w hamowanie wczesnej nefrogenezy, skutkujący zmniejszoną liczbą nefronów. Użyliśmy NGS do oceny ekspresji miRNA i odkryliśmy, że 19 miRNA było regulowanych w górę i 25 w dół w 17-DG LP w porównaniu z metanefro NP. Spośród 10 najbardziej rozregulowanych miRNA wybraliśmy 7 miRNA z celami biologicznymi zaangażowanymi w proliferację, różnicowanie i apoptozę komórkową. Analiza danych zarówno miRNA-Seq, jak i TaqMan ujawniła spójne i specyficzne zmiany w ekspresji miRNA u zwierząt LP w stosunku do kontrolnych zwierząt NP dopasowanych wiekowo.
Rodzina miR-181 składa się z czterech wysoce konserwatywnych członków, a mianowicie miR-181a, miR-181b, miR-181c i miR-181d [ 42]. W komórkach nowotworowych miR-181a działa jako supresor nowotworu, hamując proliferację i migrację komórek oraz indukując apoptozę komórek [43]. Badanie to ujawniło zwiększoną ekspresję miR-181a-5p w 17-DG LP w stosunku do potomstwa NP dopasowanego wiekowo. Chociaż ekspresja mRNA kaspazy pozostała niezmieniona, dwukrotny wzrost stosunku mRNA Bax/Bcl-2 u potomstwa LP w porównaniu z potomstwem NP sugeruje zwiększoną apoptozę w CM, co wskazuje, że apoptoza jest regulowana potranskrypcyjnie. Badania wykazały, że rodzina BCL promuje uwalnianie cytochromów z mitochondriów, a następnie hamuje aktywację Casp3, hamując w ten sposób apoptozę komórek [44]. Li i in. zastosowali model ostrego uszkodzenia płuc, aby wykazać, że nadekspresja miR-181a jest związana z obniżonym poziomem białka Bcl-2; odwrotnie, hamowanie miR-181a zwiększało poziomy Bcl-2 [45]. Badanie to potwierdziło wyniki Lv i wsp., którzy wykazali, że miR-181c ujemnie reguluje ekspresję Six-2 i proliferację komórek, równolegle do utraty fenotypu komórek mezenchymalnych podczasnerkarozwój w LP 17-DG potomstwo [25].
Xiang i in. wykazali, że zwiększona ekspresja miR-144 tłuminerkowyproliferacja raka, skutkująca krótszą fazą G2/M. Ponadto Xiang i in. wykazali, że nadekspresja miR-144 hamuje ekspresję genu mTOR i białka [46]. Nijland i in. wykazali, że wzrost sygnalizacji mTOR ma kluczowe znaczenie dla określenia liczby nefronów w zarodkach, których matki poddano restrykcji żywieniowej [47]. Ssak docelowy kompleksu rapamycyny 1 (mTORC1) jest niezbędny dla rozwoju zarodka; jednak sposób, w jaki ten kompleks reguluje równowagę między wzrostem a autofagią w warunkach fizjologicznych i stresie środowiskowym, pozostaje nieznany [48]. Dlatego sygnalizacja mTOR może być zaangażowana w odpowiedzi komórkowe u zwierząt narażonych na przyjmowanie LP podczas ciąży; w percepcji, indukcji i zakończeniu autofagii; oraz w odpowiedzi na wewnątrzkomórkową dostępność składników odżywczych [46]. Hipotetycznie, podczas ostrej restrykcji białek, zmniejszona ekspresja miR-144-3p może być związana ze zwiększoną ekspresją mTOR, odpowiednio około 139 procent i 104 procent w komórkach CM i UB, aby zrekompensować utratę nefronów w {{ 11}}DG LP potomstwo Chen i in. zdefiniował miR-127 jako nowy regulator starzenia się komórek poprzez Bcl-6 [49]. Pan i in. poinformował, że niedostateczna ekspresja miR-127 koreluje ze zwiększoną proliferacją komórek w komórkach wątroby [50]. Badanie to wykazało zmniejszenie proliferacji komórek i znaczne zmniejszenie liczby komórek znakowanych dodatnio dla Ki-67 w CM zwierząt z ograniczeniem białka. Ponadto zaobserwowano zmniejszenie obszaru nerczycowego i proliferację potomstwa LP, co było zgodne z wynikami Menendez-Castro i in. u 8,4% potomstwa o ograniczonej zawartości białka [51, 52]. Tak więc, zwiększona ekspresja Ki-67 i Bcl-6 mRNA, której towarzyszy zmniejszona ekspresja miR-127-3p w czapeczce 17-DG LP może być związana z mechanizmami kontrregulacyjnymi w celu utrzymania proliferacja.


Sun i in. wykazali, że nadekspresja miR-199a-5p, oprócz kontrolowania cyklu komórkowego, zmniejsza proliferację komórek torbielowatych i indukuje apoptozę [53]. W tym badaniu zmniejszeniu ekspresji miR-199a-5p w 17-DG LP towarzyszy zwiększona transkrypcja Ki-67, markera proliferacji komórkowej i Map2k2 wiąże się ze zmniejszoną reaktywnością Ki-67 w metanerkach LP 17-DG. Tak więc niedożywienie ciążowe sprzyja różnicowaniu poprzez mechanizm posttranskrypcyjny. Warto zauważyć, że nasze wyniki ujawniają represyjną rolę homeoboxu E wiążącego palec cynkowy 1 (ZEB1), induktora EMT, który utrzymuje pluripotencję komórek macierzystych podczas różnicowania embrionalnych komórek macierzystych. Wiadomo, że katenina aktywuje transkrypcję jądrową ZEB1, prowadząc do ekspresji ZEB1 [34]. Szlak sygnałowy TGF, jeden z najlepiej zbadanych szlaków, może indukować EMT podczas rozwoju embrionalnego. Do rozwoju embrionalnego wymaganych jest kilka ligandów podobnych do TGF. Jednak nie wszystkie wpływy TGF na EMT zależą od ZEB1/2, komórki knockout mogą indukować ekspresję genów mezenchymalnych fibronektyny i N-kadheryny. Jednak E-kadheryna nie jest już regulowana w dół, a także tworzą się włókna aktynowe [54]. Karner i in. poinformował, że podczasnerkowyrozwój, Wnt9b/ -catenin

Ścieżka sygnałowa, wyrażana zarówno w UB, jak i CM, jest wymagana zarówno do odnowy, jak i różnicowania komórek progenitorowych nefronów, niezbędnych do tworzenia nefronów podczas embriogenezy [55]. Ewolucyjnie zachowany szlak Wnt9b/-katenina odgrywa kluczową rolę w rozwoju narządów, tkanek i naprawie uszkodzeń w organizmach wielokomórkowych. Badanie wykazało, że c-Myc jest transkrypcyjnym celem dla kateniny, regulującym proliferację i różnicowanienerkowynabłonek kanalikowy [56]. Ekspresja -kateniny na poziomie genu i białka wzrosła w badanych okresachnerkowyrozwój płodu 17-DG LP. Pan i in. donoszą, że Myc współpracuje z kateniną w celu promowania odnowy komórek progenitorowych nefronu [10]. Tutaj w porównaniu z dopasowanym wiekowo potomstwem NP, LP wykazywał niższą ekspresję c-Myc. W związku z tym zwierzęta te mogą mieć mniejszą rezerwę odnawialnych komórek niezbędnych do proliferacji i przeżycia i mogą odzwierciedlać mniejszą liczbę nefronów w modelu LP. Ponadto,
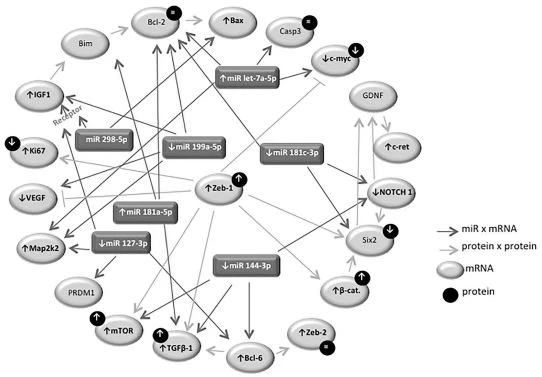
Szlaki sygnałowe Wnt/-katenina i Notch mogą koordynować regulację ekspresji Six-2 i są zaangażowane w regulację w dół ekspresji Six-2 w komórkach progenitorowych nefronu. Badania wykazały, że niski poziom kateniny może być wymagany do utrzymania ekspresji Sześciu-2 i komórek progenitorowych CM w stanie niezróżnicowanym; ponadto podwyższone poziomy -kateniny determinują los komórek progenitorowych nefronu [57, 58]. Zatem stawiamy hipotezę, że zmniejszona sygnalizacja cMyc i Notch, której towarzyszyła zwiększona ekspresja kateniny, zmniejszyła ekspresję Six-2 o 28% u potomstwa 17-DG LP i korelowała z wczesnym różnicowaniem komórek CM i zmniejszoną liczbą komórek macierzystych i liczba nefronu w wieku dorosłym. Co więcej, nasze dane mogą utrzymywać, że w komórkach MM potomstwa LP, zwiększona ekspresja Let-7a-5p i -katenina oraz zmniejszony sygnał Notch mogą modulować c-Myc, Six-2, i ekspresję Ki-67, prowadzącą do zmniejszenia samoodnowy komórek progenitorowych. Ubytek pozostałych komórek progenitorowych CM prowadzi do zmniejszenia liczby nefronów i rozwoju nadciśnienia tętniczego inerkowyzaburzenia w wieku dorosłym (ryc. 10). Zgodnie z wynikami Boivina i wsp., nasze wyniki wskazują, że zwiększona CM-katenina zaburza wzrost UB i nefrogenezę [59]. Badania wykazały, że czynnik wzrostu pochodzenia glejowego (GDNF), kluczowy regulator wzrostu UB, przekazuje sygnały przez receptor kinazy tyrozynowej c-Ret i koreceptor Gfra1 [60, 61]. W 17-potomstwie DG LP znaczący

wzrost mRNA kodującego receptor c-Ret teoretycznie prowadziłby do wzrostu wzrostu UB. Jednak w tym badaniu ekspresja GDNF pozostała niezmieniona, co sugeruje, że pomimo wzrostu cRet mRNA, rozgałęzienie UB zostało zmniejszone. Wcześniej obserwowaliśmy 28,3 procentową redukcję rozgałęzień pączków moczowodu po 14,5 dniu ciążowego ograniczenia białka [4], co może być związane z 28-procentowym zmniejszeniem znakowania komórek MM Six{-2, pomimo braku zmian w GDNF transkrypcja. -katenina prawdopodobnie oddziałuje z receptorem c-ret i jest transportowana do jądra komórki UB, promując ekspresję TGF -1 w komórkach nabłonka, hamując rozgałęzienie UB i powodując przedwczesne różnicowanie komórek progenitorowych CM, jak widać w {{11} } Potomstwo DG LP [62–64]. W związku z tym GDNF może nie mieć zasadniczego znaczenia w przekazywaniu sygnałów mezenchymalnych do pączka moczowodu; jednak mechanizm pozostaje do wyjaśnienia. Rzeczywiście, wykazaliśmy, że MM z potomstwa 17-DG LP wykazywał specyficzny wzrost ekspresji Let-7 miRNA, co skutkuje znacznym osłabieniemnerkarozwoju, potwierdzając tym samym modulacyjną rolę tych genów w rozwojowym czasie nefrogenezy [65].
We wstępnych badaniach nad insulinopodobnym czynnikiem wzrostu (IGF) główne role IGF-1 i -2 we wzroście płodu zostały wyjaśnione przez liczne, ale w większości pośrednie dowody. Stwierdzono, że IGF działają jako czynniki proliferacji i różnicowania w hodowanych komórkach płodowych i zarodkach przedimplantacyjnych. Ponadto stwierdzono, że IGF są wydzielane przez hodowane komórki płodowe i eksplantaty in vitro [66]. Czynniki wzrostu, w tym IGF, mogą powodować częściowe lub pełne przejście nabłonkowo-mezenchymalne. Aktywacja szlaków IGF skutkuje zwiększeniem EMT poprzez indukcję ekspresji ZEB1 [67]. Chociaż kilka potencjalnych czynników wzrostu jest zaangażowanych wnerkarozwoju, czy są zaangażowane w nefrogenezę, nie jest znane. W różnym czasie mogą być potrzebne różne czynniki wzrostu. Niektóre czynniki wzrostu mogą być w tym kontekście zbędne. Podczas rozwoju embrionalnego potrzebne są sekwencyjne cykle EMT i MET, aby odróżnić wyspecjalizowane typy komórek i stworzyć trójwymiarową strukturę. W tym badaniu stwierdzono, że interkonwersja mezenchymalno-nabłonkowa utrzymuje plastyczność komórek, co sugeruje obecność wysoce indukowalnego systemu w warunkach LP dla zarodka. Ekspresja rodziny miRNA Let-7 była szeroko badana w różnych tkankach płodowych. Wzrost ekspresji Let-7 miRNA jest związany ze zmniejszoną proliferacją i wczesnym wzrostem różnicowania komórek MM, a w konsekwencji zmniejszoną liczbą nefronów [27, 15, 68–71]. Wyższą ekspresję Let-7 wykazano w organizmach wyższych podczas ostatniej fazy embriogenezy mózgowej u gryzoni [72, 73]. Nagalakshmi i in. ujawnili, że ekspresja miRNA Let-7 zmieniła los komórek nabłonka UB ze stanu prekursorowego do stanu zróżnicowanego [71]. Natomiast Yermalovich i in. wykazali, że nadekspresja Lin28b, białka wiążącego RNA, jest powiązana z supresyjnymi miRNA Let-7. Chociaż lin28 i Let-7 są znanymi regulatorami czasu rozwoju osobniczego u bezkręgowców, ich rola w rozwoju narządów ssaków nie jest zrozumiała [65]. W tym badaniu wzrost ekspresji Let-7a-5p miRNA u płodu LP może być związany ze zmniejszoną proliferacją komórek CM, upośledzając nefrogenezę w porównaniu z grupą NP. Zatem stawiamy hipotezę, że supresja proliferacji komórek CM i wczesne zaprzestanie nefrogenezy spowodowane przez zwiększone miRNA Let-7 może wystąpić bezpośrednio lub pośrednio poprzez przejściowo zmniejszoną ekspresję Lin28b w 17-DG LP. Ten efekt może znacznie osłabićnerkarozwój w 17-DG LP, potwierdzając, że ten gen reguluje czas rozwoju podczas nefrogenezy. W tym badaniu zwiększona ekspresja miRNA Let-7a-5p zbiega się ze spadkiem ekspresji c-Myc. Myc bierze udział w proliferacji, wzroście, apoptozie i różnicowaniu komórek podczasnerkowyorganogeneza [74–76]. U potomstwa LP 17-DG ekspresja genu MM c-Myc była zmniejszona, a obszar immunoreaktywności CM c-Myc był o 14% mniejszy w porównaniu z potomstwem NP. Jednocześnie zaobserwowano, że 14-procentowy spadek liczby komórek CM zmniejszał immunoreaktywność Ki-67 o 48 procent w LP w stosunku do potomstwa NP. Konsekwentnie badania wykazały, że c-Myc odgrywa ważną rolę w końcowej fazie rozgałęzień UB oraz w stymulowaniu proliferacji komórek progenitorowych CM [74].
CISTANCHE POPRAWI INFEKCJE NEREK/NEREK
obniżony poziom w komórkach macierzystych, utrzymując je w stanie niezróżnicowanym. Jednak w tym badaniu silna ekspresja miRNA Let-7a-5p w CM obniżyła ekspresję c-Myc, zmniejszając w ten sposób proliferację komórek progenitorowych i wczesne różnicowanie komórek w LP 17-DG potomstwo (ryc. 10). Badania nadnerkitransgenicznych myszy c-Myc wykazało jednoczesne zmniejszenie liczby immunopozytywnych komórek CM c-Myc i S-ix-2 związane ze zmniejszoną proliferacją komórek macierzystych [74]. To badanie pokazuje znaczną (28 procent) redukcję w sześciu -2 pozytywnych komórkach, specyficznymnerkowymarker komórek macierzystych, podobnie jak spadek obserwowany w liczbie nefronów, w CM potomstwa 17-DG LP w porównaniu z potomstwem NP. W 2009 roku Fogelgren i in. wykazali, że ekspresja genów Six-2 jest zmniejszona podczas ontogenezy płodu, gdy jest związana ze zmniejszoną liczbą nefronów, nadciśnieniem i przewlekłyminiewydolność nerek[77]. Zatem zmniejszona ekspresja genów Six-2 w komórkach progenitorowych CM wskazuje na tłumienie różnicowania indukowanego sygnałem podczasnerkowyrozwój w potomstwie 17-DG LP. Niemniej jednak nadmiarowość należy stosować ostrożnie — subtelne defekty w nefrogenezie mogą stać się widoczne przy bardziej szczegółowej analizie lub w innych warunkach. Poziomy mRNA IGF1 były najwyższe w początkowym okresie rozwoju metanerkowego, przy czym transkrypty były wykrywane w całym MM, podczas gdy ich poziomy spadały podczas dalszego rozwoju. Jednak w trakcienerkaembriogeneza, delikatna równowaga między czynnikami wzrostu ułatwiającymi nefron (IGF1) i hamującymi czynnikami wzrostu (TGF -1) reguluje rozgałęzienie UB.

Wniosek
Chociaż kilku autorów badało nefrogenezę [34, 37, 78], niewiele wiadomo na temat mechanizmów determinujących liczbę nefronów. Badanie to pokazuje, że wiele miRNA, mRNA i białek komórek progenitorowych MM jest zmienionych u potomstwa 17-DG LP, co prowadzi do zmniejszonej proliferacji i wczesnego różnicowania komórek (ryc. 11). Ta delikatna równowaga między odnowieniem i różnicowaniem komórek progenitorowych nefronu jest niezbędna dla:nerkarozwoju, ponieważ nieosiągnięcie odpowiedniej liczby nefronów jest czynnikiem ryzyka przewlekłegonerkowynieład.